
Un Caso Completo: las Epotilonas
Los temas anteriores han presentado, uno a uno, los métodos de separación y las técnicas espectroscópicas. Esta página los pone a trabajar juntos sobre un caso real: el camino que lleva de un puñado de tierra a una fórmula estructural con siete estereocentros. El ejemplo son las epotilonas, y el esquema —cultivo, extracción, purificación, fórmula molecular, conectividad, configuración— es el mismo para cualquier producto natural.
Por Qué estas Moléculas
Las mixobacterias son bacterias del suelo que se deslizan en enjambre, construyen cuerpos fructíferos y producen una química secundaria extraordinariamente rica. En los años ochenta, el grupo de microbiología de Hans Reichenbach y el de química de Gerhard Höfle, en el centro de investigación GBF de Braunschweig, montaron un programa sistemático: aislar cepas, cultivarlas, cribar los extractos y determinar la estructura de todo lo que resultara activo.
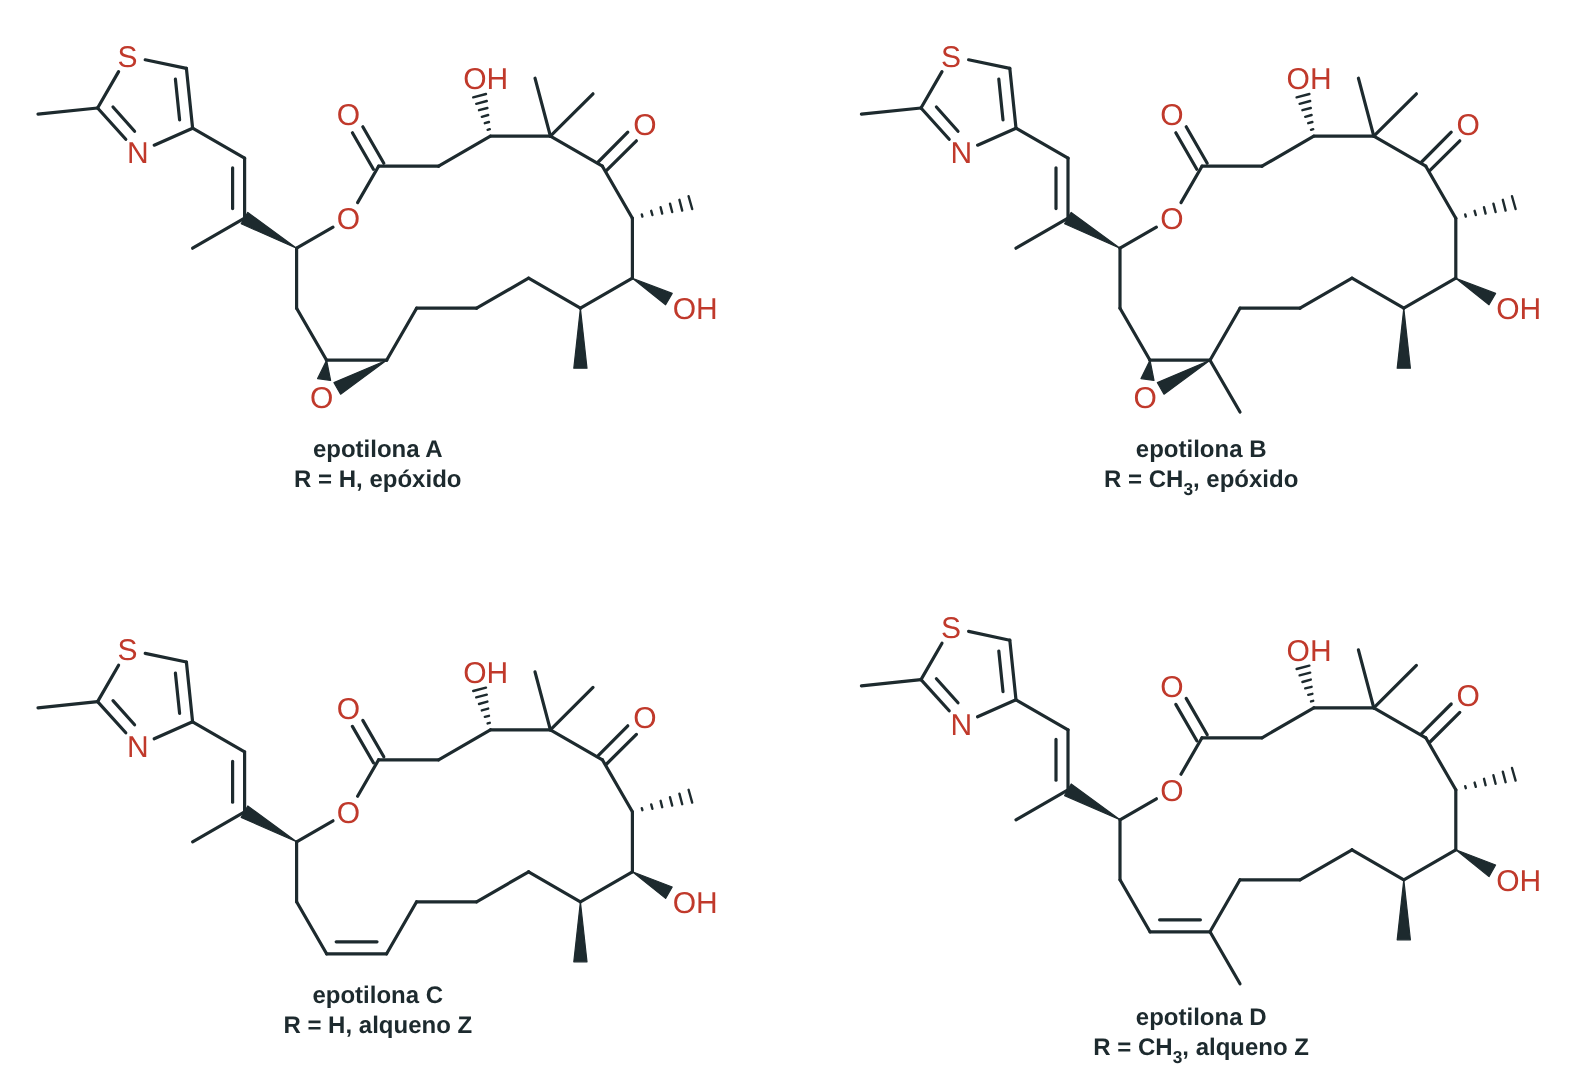
De una muestra de suelo recogida a orillas del río Zambeze salió la cepa Sorangium cellulosum So ce90. Su extracto mataba hongos y, sobre todo, era muy citotóxico. La estructura completa se publicó en 1996, y el nombre epotilona resume lo que se veía en ella: epóxido, tiazol y cetona. Poco antes, un grupo de Merck había descubierto que estas moléculas actúan como el taxol: estabilizan los microtúbulos y bloquean la división celular.
El Esquema de Trabajo
Todo aislamiento de un producto natural recorre las mismas seis etapas. Lo que cambia de un caso a otro es la escala, el número de columnas y cuántas de las técnicas finales hacen falta.
- Cultivo: fermentación de la cepa en condiciones reproducibles, siguiendo la actividad del caldo con un ensayo biológico sencillo.
- Extracción: separar los metabolitos del medio y de las células.
- Purificación: cromatografías sucesivas, cada una con un principio de separación distinto.
- Fórmula molecular: masa exacta y análisis elemental.
- Conectividad: IR, UV y, sobre todo, RMN de una y dos dimensiones.
- Configuración: NOE, derivados quirales, degradación química y difracción de rayos X.
1. El Cultivo y el Problema del Rendimiento
Sorangium cellulosum crece despacio: una fermentación tarda días, y la concentración de epotilonas en el caldo es de unos pocos miligramos por litro. Peor aún, los propios metabolitos son tóxicos para la bacteria que los fabrica y se degradan en el medio acuoso.
La solución fue añadir al fermentador una resina adsorbente no iónica de poliestireno. Los compuestos lipófilos se adsorben en cuanto se forman: se retiran del medio, dejan de inhibir a la bacteria, se protegen de la hidrólisis y, de paso, quedan ya concentrados en un sólido fácil de filtrar. Es la retirada del producto in situ, una táctica que conviene recordar siempre que un metabolito sea inestable o inhibidor.
La cantidad disponible condiciona todo lo que viene después. Con unos pocos miligramos se puede medir un espectro de RMN de protón; para un 13C con buena relación señal/ruido, o para cristalizar, hacen falta decenas de miligramos, y eso significa cientos de litros de cultivo.
2. De la Resina al Extracto Crudo
La resina se separa del caldo por filtración y se eluye con un disolvente orgánico. El eluato se concentra a vacío y queda un aceite oscuro que contiene, además de las epotilonas, lípidos, pigmentos y decenas de metabolitos más. Un reparto líquido-líquido entre disolventes de polaridad distinta, como el que se describe en la página de la extracción, elimina de golpe buena parte de lo que sobra.
Durante toda la operación hay que ir siguiendo dónde está la actividad. Se divide la muestra, se ensaya cada fracción y se continúa solo con la que mata células: es el fraccionamiento guiado por el ensayo biológico, el hilo conductor de todo aislamiento de un producto activo.
3. La Purificación
Ninguna cromatografía separa sola una mezcla tan compleja. Se encadenan varias, y la regla es que cada una separe por un principio distinto. Los fundamentos de cada técnica están en las páginas de los métodos cromatográficos y de la cristalización.
| Técnica | Separa por | Qué elimina |
|---|---|---|
| Reparto líquido-líquido | solubilidad | sales, azúcares, lípidos muy apolares |
| Columna de gel de sílice | polaridad (adsorción) | la mayor parte de la materia colorante |
| Exclusión molecular (Sephadex) | tamaño molecular | polímeros y moléculas pequeñas |
| HPLC preparativa en fase inversa | hidrofobia | los análogos muy parecidos entre sí |
| Cristalización | empaquetamiento en la red | las últimas trazas; da cristales para rayos X |
El paso difícil es el último antes de la cristalización. Las epotilonas A y B se diferencian en un solo grupo metilo, y las C y D son sus desoxi análogas: los cuatro compuestos salen juntos de la columna de sílice y solo la HPLC en fase inversa los separa limpiamente. Que existan esas familias de análogos muy próximos es la norma, no la excepción, en el metabolismo secundario.
4. La Fórmula Molecular y los Grados de Insaturación
Con el compuesto puro en la mano, la primera pregunta es cuántos átomos tiene. La espectrometría de masas de alta resolución da la masa exacta del ion molecular con cuatro decimales, y de todas las combinaciones posibles de C, H, N, O y S solo una encaja dentro del error del instrumento. Para la epotilona A sale C26H39NO6S; para la B, C27H41NO6S, exactamente un CH2 más.
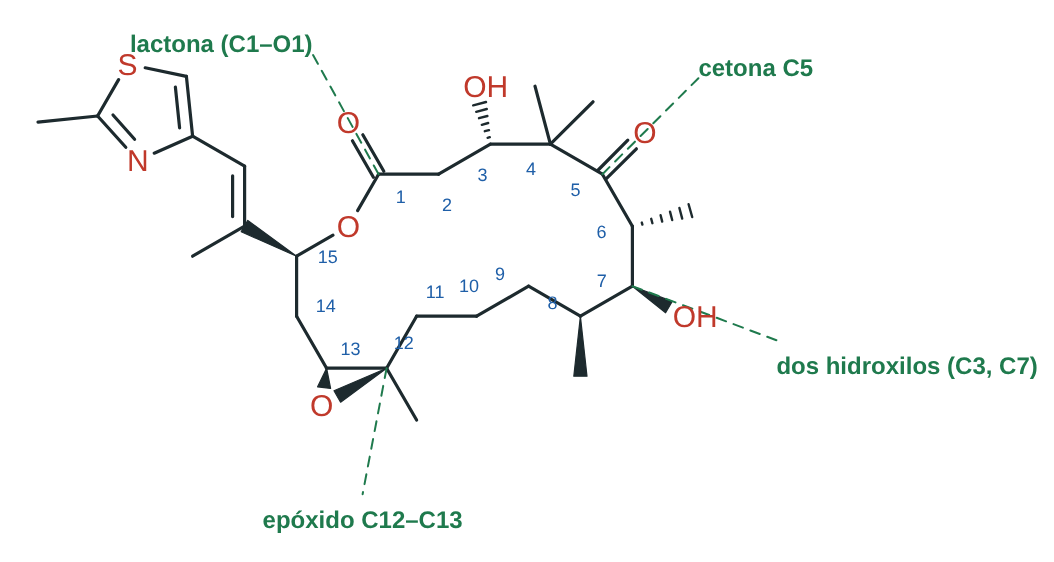
De la fórmula se calcula el índice de insaturación. Para C27H41NO6S: (2 × 27 + 2 + 1 − 41) / 2 = 8. Ocho insaturaciones que hay que colocar: el anillo de tiazol aporta tres, el doble enlace de la cadena lateral una, la lactona y la cetona una cada una, el epóxido otra y el macrociclo la octava. Esta cuenta, hecha al principio, impone una disciplina sobre todas las estructuras que se propongan después.
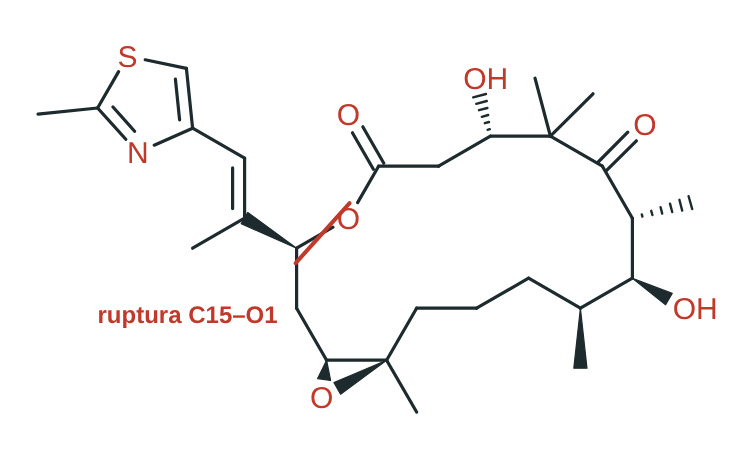
La fragmentación añade información. Las rupturas se producen donde el enlace es más débil o el fragmento resultante más estable: en un macrólido, el enlace C–O de la lactona es el candidato natural, y el fragmento que conserva la cadena lateral con el tiazol identifica esa parte de la molécula.
5. Los Grupos Funcionales: IR y UV
El infrarrojo es rápido y dice qué grupos hay, aunque no dónde están. En las epotilonas se ven la banda ancha del hidroxilo hacia 3400 cm−1 y, en la región del carbonilo, dos bandas distintas: la del éster de la lactona, cerca de 1740 cm−1, y la de la cetona, algo por debajo. Que aparezcan separadas ya indica que hay dos carbonilos de clase distinta.
El ultravioleta busca cromóforos conjugados. Una cadena saturada no absorbe en la región accesible, de modo que la absorción que se observa tiene que venir del tiazol conjugado con el doble enlace de la cadena lateral. El UV, por sí solo, no habría bastado; combinado con el azufre y el nitrógeno de la fórmula molecular, apunta ya a un heterociclo de azufre y nitrógeno.
6. La Conectividad: RMN de Una y Dos Dimensiones
Aquí se juega la partida. La estrategia consiste en contar primero y conectar después.
Contar
- El espectro de protón da el número de hidrógenos de cada clase, sus constantes de acoplamiento y, por la zona en que aparecen, su entorno: los dos protones del tiazol y el vinílico a campo bajo, los que están sobre carbono con oxígeno entre 3 y 5 ppm, el enjambre de metilos a campo alto.
- El espectro de carbono-13 cuenta los carbonos. Los dos a campo más bajo son los carbonilos; el del éster aparece más apantallado que el de la cetona, lo que confirma la lectura del IR.
- El DEPT clasifica cada carbono en CH3, CH2, CH o cuaternario. Sumando los hidrógenos así contados y comparando con la fórmula molecular salen los que están sobre heteroátomo: los dos hidroxilos.
Conectar
- El COSY correlaciona protones que se acoplan entre sí, es decir, que están en carbonos contiguos. Recorriendo las manchas se encadenan sistemas de espines: trozos de molécula continuos que terminan allí donde se acaba la cadena de hidrógenos.
- El HSQC (o HMQC) une cada protón con el carbono al que está directamente unido, y traduce así los fragmentos de protón en fragmentos de esqueleto carbonado.
- El HMBC es la pieza decisiva. Correlaciona protones con carbonos a dos y tres enlaces, de modo que salta por encima de los carbonos sin hidrógeno: los cuaternarios, los carbonilos, los del heterociclo. Son esos saltos los que cosen entre sí los sistemas de espines y cierran el macrociclo.
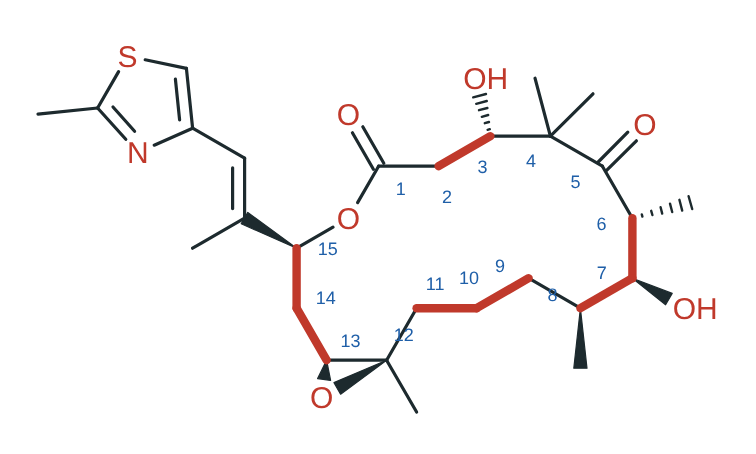
Obsérvese dónde se interrumpen los trazos rojos: en el carbono cuaternario con dos metilos, en los dos carbonilos y en el epóxido tetrasustituido. Un COSY, por bueno que sea, deja la molécula en cuatro o cinco trozos sueltos; es el HMBC el que dice en qué orden van.
La lactona merece un comentario. Que el éster sea cíclico no se ve en el IR ni en el espectro de protón: se deduce de que el protón de C15, desplazado a campo bajo por el oxígeno del éster, correlacione en el HMBC con el carbonilo de C1, que pertenece al otro extremo de la cadena. Esa única mancha cierra el anillo de dieciséis eslabones.
7. La Estereoquímica
Queda lo más laborioso. La epotilona B tiene siete estereocentros y un doble enlace trisustituido: 27 = 128 estereoisómeros posibles, multiplicados por dos si se cuenta la geometría del alqueno. Hay que resolver dos cosas distintas, y conviene no confundirlas: la configuración relativa (cómo están unos centros respecto a otros) y la absoluta (cuál de las dos imágenes especulares es).
La Configuración Relativa
- Las constantes de acoplamiento dependen del ángulo diedro (ecuación de Karplus) y distinguen posiciones cis y trans en los anillos y la geometría de los dobles enlaces.
- El NOE (en un macrociclo flexible, mejor medido como NOESY o ROESY) delata los protones próximos en el espacio aunque estén lejos a lo largo de los enlaces. Es la herramienta principal cuando no hay anillos rígidos.
- Un macrociclo de dieciséis eslabones no es rígido, de modo que las distancias medidas son promedios conformacionales. Por eso en estos casos la asignación relativa por NOE se considera una hipótesis sólida, no una prueba.
La Configuración Absoluta
Para fijarla hay tres caminos, y en las epotilonas se recorrieron los tres.
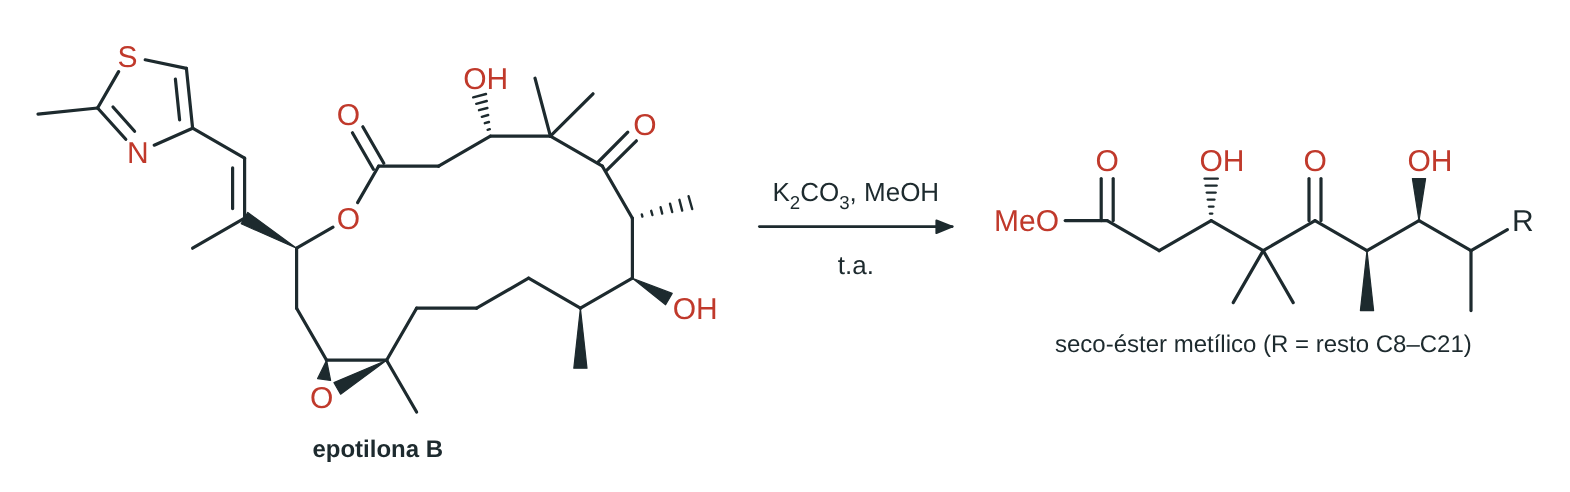
- Degradación química. Se rompe la molécula en trozos manejables y se comparan con patrones de configuración conocida. La metanólisis de la lactona abre el macrociclo: el seco-éster resultante es flexible, tiene espectros mucho más limpios y puede trocearse más.
- Derivados quirales. El método de Mosher esterifica un alcohol secundario con los dos enantiómeros del ácido α-metoxi-α-(trifluorometil)fenilacético (MTPA). El anillo aromático del reactivo apantalla selectivamente un lado de la molécula; la diferencia de desplazamientos químicos entre los dos ésteres, Δδ, tiene un signo distinto a cada lado del carbinol, y ese signo da la configuración.
- Difracción de rayos X. Si el compuesto cristaliza, resuelve de una vez la configuración relativa y, con un átomo pesado como el azufre del tiazol, también la absoluta. Es la prueba definitiva, y por eso se dedica tanto esfuerzo a conseguir un buen cristal.
8. La Prueba Final: la Síntesis
Una estructura se considera demostrada cuando alguien la sintetiza desde materiales sencillos y el producto es indistinguible del natural en todas sus propiedades, incluida la rotación óptica. Las epotilonas pasaron esa prueba muy deprisa: los grupos de Samuel Danishefsky, K. C. Nicolaou y Dieter Schinzer completaron las primeras síntesis totales entre 1996 y 1997, apenas unos meses después de publicarse la estructura.
La síntesis hace algo más que confirmar: abre la puerta a los análogos. Como las rutas eran convergentes, bastaba cambiar un fragmento para preparar decenas de variantes y estudiar qué parte de la molécula hace falta para la actividad. De ese trabajo salió la ixabepilona, la lactama análoga de la epotilona B, aprobada en 2007 para el cáncer de mama.
El análisis retrosintético de la epotilona, con sus tres desconexiones y la metátesis de cierre de anillo, se trata en el tema 13 del curso de Química Orgánica Avanzada.
Lo que Vale para Cualquier Producto Natural
- La cantidad manda. Antes de planear los experimentos hay que saber cuántos miligramos hay.
- Cada cromatografía, un principio distinto. Repetir dos columnas de sílice seguidas casi nunca mejora lo que no separó la primera.
- Seguir la actividad en cada paso. Es la única manera de no perder el compuesto interesante en una fracción descartada.
- La fórmula molecular primero. Los grados de insaturación son una restricción que ninguna estructura propuesta puede incumplir.
- Contar antes que conectar. Protón, carbono y DEPT fijan el inventario; COSY, HSQC y HMBC lo ensamblan.
- El HMBC salta los huecos. Allí donde no hay hidrógenos, las correlaciones a larga distancia son la única conexión posible.
- Separar la configuración relativa de la absoluta. El NOE resuelve la primera; para la segunda hacen falta un patrón quiral, una degradación o un cristal.
- La síntesis es el tribunal de última instancia. Mientras no se reproduzca la molécula, la estructura es una propuesta muy bien fundada.
Cronología
| Año | Hito |
|---|---|
| 1985–1987 | Se aísla la cepa Sorangium cellulosum So ce90 y se detecta la actividad de su extracto |
| 1993 | Primera patente de las epotilonas como agentes antifúngicos y citotóxicos |
| 1995 | Un grupo de Merck descubre que estabilizan los microtúbulos, como el taxol |
| 1996 | Höfle y colaboradores publican la estructura completa, con la configuración absoluta |
| 1996–1997 | Primeras síntesis totales (Danishefsky, Nicolaou, Schinzer) |
| 2007 | Se aprueba la ixabepilona, análoga de la epotilona B, para el cáncer de mama |
Tienes a tu disposición un curso completo sobre cómo determinar estructuras orgánicas, con el detalle de cada una de las técnicas espectroscópicas que aquí solo se nombran.